Mientras nuestro cerebro sea un arcano, el Universo, reflejo de su estructura, será también un misterio
(Santiago Ramón y Cajal)


18 de diciembre de 2010

Pío del Río Hortega (1882-1945)

Pío del Río Hortega es, probablemente después de Santiago Ramón y Cajal (1852-1934), la personalidad más destacada de la neurohistología española de todas las épocas.
Nació en Portillo (Valladolid) y en la Facultad de Medicina vallisoletana se licenció en 1905 y, más tarde se doctoró.
Aunque eventualmente ejerció la medicina (fue médico de su pueblo natal), ese trabajo le resultó tan negativo que optó por realizar el doctorado como una especie de “respiro a pulmón lleno”. Su gran interés científico lo constituyó la investigación en el campo de la histología y así, aunque realizó trabajos sobre la histología patológica de las tumoraciones nerviosas, su discípulo Ortiz Picón lo definió más como histólogo que como anatomopatólogo.
En 1913 se traslada a Madrid y trabaja en el Laboratorio de Histopatología del Sistema Nervioso que dirigía Nicolás Achúcarro Lund (1880-1918). Una vez en la capital de España, obtiene una beca para ampliar conocimientos en París y Berlín, pero la Primera Guerra Mundial le obliga a volver a Madrid. Tras el fallecimiento de Achúcarro se hace cargo de la dirección del laboratorio y, en poco tiempo, don Pío hace de él un centro de investigación de gran categoría internacional. Prueba de ello es que grandes científicos se trasladaron a Madrid para trabajar en su laboratorio; es el caso, por ejemplo, del norteamericano Wilder Penfield.
Al iniciarse la Guerra Civil se exilia a Francia donde trabaja como histopatólogo en el Hospital de la Pieté de París; posteriormente marcha a Gran Bretaña para investigar en la Universidad de Oxford (de la que fue nombrado doctor honoris causa). Finalmente, en 1940, como consecuencia de la Segunda Guerra Mundial, va a Buenos Aires y dirige, hasta su muerte en 1945, un laboratorio histológico dependiente de la Institución Cultural Española de la capital argentina.
En el mundo de la ciencia don Pío destacó por la precisión de sus tinciones tisulares. En efecto, fue alterando la tinción de Achúcarro (que utilizaba tanino y plata amoniacal) de tal manera que consiguió realizar importantes estudios de la estructura anatómica de las neuronas y de la neuroglía, desarrollando su famoso método del carbonato de plata amoniacal (1918). Estos métodos de tinción permitieron el descubrimiento de unas células que Ramón y Cajal había llamado tercer elemento o glía adendrítica; los otros elementos eran las neuronas (primer elemento) y la neuroglía (segundo elemento), donde se encontraban formas celulares como los astrocitos de la sustancia gris y los de la sustancia blanca. En efecto, Río Hortega demostró la existencia de dos estirpes celulares diferentes en este tercer elemento: las células de oligodendroglía y las células de microglía.
Además, en la década de los 20, el investigador castellano publicó numerosas investigaciones sobre la morfología y génesis de estas células que le valieron renombre internacional. Así, dos importantes científicos alemanes (Metz y Spatz) ya hablaban en esos años de las “células de Hortega” para designar a la microglía. 

7 de diciembre de 2010

El dilema del sueño

Todos los animales vertebrados duermen. Aunque los anfibios y peces no lo hacen con las características que definen el sueño en los demás animales, también manifiestan periodos de inactividad semejantes al sueño.
Y es que el sueño debe ser necesario ya que algunas especies de mamíferos probablemente estarían mejor en vigilia permanente que soportando los peligros que tienen cuando duermen. Es el caso, por ejemplo, del delfín de Índico, que duerme hasta 7 horas al día a pesar de ser ciego y de nadar constantemente en las oscuras aguas del golfo Índico. Su adaptación al sueño es muy peculiar ya que duerme dando pequeñas “cabezadas” de menos de un  minuto. 
Otros animales presentan estrategias de sueño diferentes. Así, por ejemplo, el delfín de morro de botella posee dos hemisferios cerebrales que duermen por turnos: el  derecho unas veces y el izquierdo otras. De esta forma un hemisferio cerebral siempre está vigilante.
La conclusión consecuente de estos y otros hechos es que si esta conducta, la del sueño, fuera innecesaria muchos animales carecerían de ella ya que, evolutivamente, habría desaparecido en buena parte de ellos. No obstante, todos los vertebrados duermen.
Sabemos que, en nuestra especie, la privación del sueño nos provoca alteraciones en la percepción y, cuando la ausencia del sueño es demasiado larga, algunas personas llegan a tener, en ocasiones, alucinaciones ligeras y problemas para realizar tareas que necesitan concentración. Sin embargo numerosos estudios científicos no han demostrado que el sueño sea necesario para el funcionamiento del organismo, ya que en los caso de privación prolongada no se han manifestado señales de estrés fisiológico aunque sí de percepción, problemas de concentración y alguna alucinación. Finalmente, cuando a la persona que se le ha privado del sueño se le permite dormir, duerme más en la primera noche pero, en ningún caso, recupera el sueño perdido.
Es por esto que la ciencia se encuentra actualmente con un  dilema difícil: el sueño parece necesario (todos los vertebrados duermen) y, a la vez, no parece imprescindible.

25 de noviembre de 2010

Autismo y genética

Alrededor de cuatro de cada diez mil niños nacen con autismo y aunque sabemos de diversos factores ambientales que aumentan el riesgo de padecer autismo, bien es cierto que ninguno de ellos es suficiente por si mismo para que se manifieste la patología. La mayor parte de ellos está relacionado con la exposición del embrión o del feto a los efectos nocivos de algunos virus como el de la rubéola, o a sustancias químicas como el ácido valproico o el etanol.
Desde hace tiempo se sabía que el autismo tenía un componente genético. Es curioso que algunas patologías genéticas incrementan la posibilidad de padecer autismo; es el caso, por ejemplo, de la fenilcetonuria y del síndrome del cromosoma X-frágil, trastornos ambos que se expresan con bajos niveles de inteligencia. En este último caso hay que tener en cuenta que el 15% de los afectados con el síndrome del X-frágil sufre autismo.
Aunque hay un 95% de casos en los que un autista no tiene parientes con el trastorno, en su familia es más probable que se dé un porcentaje mayor de alteraciones afectivas, sociales, comportamientos estereotipados, tics, déficit de comunicación, anomalías del lenguaje, epilepsia, etc., irregularidades características de esta patología. Además, los hermanos de autistas tienen una probabilidad entre un 3 y un 8% de padecer la enfermedad, lo que contrasta considerablemente con el 0,16% de riesgo de la población no emparentada con autistas. Bien es cierto que si el autismo fuera debido a un solo alelo (dominante o recesivo) la probabilidad sería mayor. Y es que en esta enfermedad hay muchos genes implicados.
Por otra parte, para confirmar las implicaciones de los genes, hay estudios diferentes que indican que cuando una persona es autista su gemelo idéntico tiene una probabilidad entre el 60% y el 96 % de serlo también. Finalmente, hay que decir que la incidencia del autismo es 3-4 veces superior en los varones que en las mujeres.
Entre un 5 % y un 15 % de los casos de autismo presentan alteraciones cromosómicas que afectan al número o a la estructura (deleciones, duplicaciones, etc.). Las más frecuentes implican a los cromosomas 15 y al cromosoma X.
En este siglo se ha relacionado el autismo con las variantes anómalas de dos genes situados en el cromosoma X. Estos genes son responsables de la síntesis de unas proteínas que se encuentran en la superficie de las neuronas y parece que sirven para que se produzca la correcta transmisión de los impulsos nerviosos. Por otra parte, también se han descubierto variantes de genes normales localizados en los  cromosomas 2, 16 y 17 que están implicados en la enfermedad.
Asimismo, en el cromosoma 7, otros investigadores han encontrado dos genes relacionados con el autismo: uno es un gen que parece que tiene una importancia fundamental en una forma de trastorno del lenguaje característica de los autistas.
Hay otro gen que se relaciona con el autismo; se denomina HOXA1 y también se localiza en el cromosoma 7. De este gen se han encontrado varios alelos diferentes que se consideran, al menos parcialmente, responsables de la enfermedad, ya que se presentan con más frecuencia en la población autista que en la que no lo es. Sin embargo, su presencia no implica la existencia de autismo y su ausencia no supone la imposibilidad de padecer el trastorno: se encuentra en un 20% de las personas normales y en un 40% de las autistas.

15 de noviembre de 2010

Endorfinas, morfinas y sistema nervioso

Durante siglos el opio ha sido punto de referencia debido a su capacidad para reducir el dolor y producir euforia. Pero desde un aspecto terminológico conviene recordar que opiáceo se refiere a todos los productos derivados de la planta emparentada con la amapola y a la que los científicos denominan Papaver somniferum, o lo que es igual: “hierba del sueño”.
El vegetal produce un fruto en cápsula, globoso, que al hacerle unos pequeños cortes suelta un líquido que cuaja en contacto con el aire, el opio, y que contiene más de
veinte alcaloides. De éstos, el más importante es la morfina, sustancia descubierta en 1804 por el farmacéutico alemán Sertürner y así llamada en honor a Morfeo, dios del sueño de la mitología griega.
La morfina fue utilizada como analgésico desde el primer momento, aunque pronto se observó un enorme problema: creaba adicción. Por tal motivo, algunos laboratorios farmacéuticos se lanzaron a la búsqueda de un principio activo similar pero que no tuviera efectos indeseables. Así las cosas, la compañía Bayer inició en 1898 la comercialización de una sustancia, que había sintetizado en sus laboratorios, la heroína. Sin embargo, la nueva molécula, además de crear adicción, ejercía un efecto más rápido que la morfina.
En el año 1975, Hughes y Kosterlitz sorprendieron a la comunidad científica al descubrir la existencia de algunas sustancias que tenían las mismas propiedades de la morfina y… que eran sintetizadas por el propio organismo; por ello se las denominó genéricamente endorfinas, y más tarde opiáceos endógenos, para diferenciarlos de los que no eran fabricados por el cuerpo, o exógenos. Después, y en muy poco tiempo, se descubrieron otras sustancias similares: encefalina, b-endorfina, dinorfina, etc.
Curiosamente todos los opiáceos endógenos se localizan en zonas del sistema nervioso que guardan alguna relación con el procesamiento o la modulación del dolor.
¿Por qué los opiáceos actúan sobre el organismo?
Los opiáceos, endógenos o exógenos, podrán estimular a todas las neuronas que tengan receptores para ellos. Pero, ¿dónde se encuentran las células nerviosas sobre las que pueden actuar la morfina o la heroína?
Estas neuronas se localizan en diferentes zonas del cerebro: el área tegmental ventral, el núcleo accumbens, el área preóptica, la formación reticular, la sustancia gris periacueductal y otras. Pues bien, las regiones que acabo de citar explican de una manera muy clara los efectos, perfectamente detectables, de los opiáceos: refuerzo, descenso de temperatura (hipotermia), analgesia, etc. 

5 de noviembre de 2010

Señales externas y sistema neuroendocrino

El hipotálamo produce unas hormonas que pueden ser de dos tipos: las llamadas hormonas de liberación y hormonas de inhibición hipotalámicas. Estas sustancias se fabrican en el hipotálamo y viajan a través de vasos sanguíneos hasta la adenohipófisis, donde ejercen su efecto.
Veamos un ejemplo que explique esta “cascada” hormonal que nace en el hipotálamo. Esta estructura neuroendocrina produce una hormona que se denomina hormona liberadora de tirotropina (u hormona liberadora de TSH) que es llevada por los vasos sanguíneos hasta la adenohipófisis. Una vez allí actúa haciendo que se fabrique más TSH y que se libere esta hormona. La TSH, cuando llega a la glándula tiroidea, hace que se libere a la sangre las hormonas tiroxina y triyodotironina. Finalmente, estas hormonas tienen efectos sobre el metabolismo celular, crecimiento, etc.
Pero esta cascada puede ser alterada por factores perfectamente bien conocidos y estudiados: el frío afecta de tal manera al hipotálamo que provoca un aumento en la secreción de la hormona liberadora de tirotropina y por tanto, una mayor secreción de TSH primero y de hormonas tiroideas después. Determinados estados emocionales, como los de ansiedad, provocan un agudo descenso en la liberación de TSH y, en consecuencia, de las hormonas que produce la glándula tiroidea.


26 de octubre de 2010

Dopamina y psicosis

Aunque en neurobiología las pruebas científicas de un hecho neuronal casi nunca son concluyentes debido, principalmente, a las numerosas interconexiones entre las células nerviosas, es bastante incuestionable que la dopamina tiene una importancia fundamental en las psicosis. Lo que no es excluyente con otras teorías que postulan que, además, participan en la enfermedad otros neurotransmisores.
Así, en general, podemos afirmar que aquellos fármacos que aumentan la disponibilidad de la dopamina tienen efectos psicóticos positivos y los que disminuyen la dopamina tienen como efecto reducir los signos psicóticos positivos.
Ya desde la década de los 50 del siglo XX se sabía que la reserpina, disminuía los niveles de dopamina, y de otras monoaminas, y tenía un buen efecto antisicótico. También se conoce desde hace mucho tiempo que la cocaína y las anfetaminas aumentan las cantidades de dopamina en los espacios intercelulares de las neuronas y generan episodios semejantes a los que se presentan en personas enfermas por esquizofrenia.


La dopamina es un neurotransmisor que se acopla a los receptores correspondientes. Sin embargo, hay determinados fármacos que se unen a los receptores postsinápticos de la dopamina y, en consecuencia, no permiten la actuación del neurotransmisor. Cualquier fármaco que bloquea la neurotransmisión debida a la dopamina y evita o reduce los signos de la psicosis de denomina, genéricamente, neuroléptico.

17 de octubre de 2010

Las vías sensoriales tienen pocas neuronas

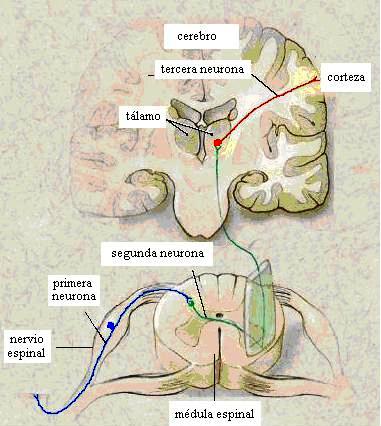
Los circuitos nerviosos que llegan a la corteza cerebral desde los receptores son vías más o menos largas, pero en ellos no suelen estar implicadas muchas neuronas. Veamos algún ejemplo.
Desde la retina ocular, donde se ubican las células receptoras visuales (conos y bastones), parten neuronas (sensitivas) que forman el nervio óptico (de cada ojo) y que finalizan en el tálamo. Aquí hacen sinapsis con otras neuronas que finalizan en la corteza visual. En resumen, un circuito visual, desde que sale del ojo, necesita dos neuronas: una que llega hasta el tálamo y otra que va desde esta región cerebral hasta la corteza cerebral.

Claro que usted pensará que esto se debe a que los receptores visuales y la corteza visual se encuentran espacialmente muy cerca. Sin embargo, aunque esto es verdad, no es por ello.
En efecto, si nos fijamos en un circuito doloroso que parte, por ejemplo, de un músculo de la pierna, los impulsos nerviosos viajan por una neurona (sensitiva) que termina en la médula espinal. Aquí conecta con otra neurona cuyo axón cruza al otro lado (decimos que decusa y, por ello, que es contralateral) y termina en el tálamo. Aquí conecta con otra neurona que finaliza en la corteza cerebral.  Es un caso, por tanto, muy semejante al anterior, con tres neuronas llega la información cerebral a ser consciente.

6 de octubre de 2010

Tipos de neurotransmisores

Hay varias clases de neurotransmisores y la mayoría de ellos generan un PEP o un PIP, aunque, en algunos casos, un determinado neurotransmisor puede producir excitación o inhibición dependiendo del receptor al que se una.
a) Algunos son aminoácidos (los componentes de las proteínas).
Son los casos del aminoácido glutamato (el neurotransmisor excitatorio más abundante en nuestra especie), el aspartato, la glicina y el ácido gamma-aminobutírico (GABA); este último es el neurotransmisor inhibidor más abundante.
b) Otros son monoaminas.
En este caso hay dos grupos de neurotransmisores: las catecolaminas y las indolaminas. De entre las primeras destacamos la dopamina, adrenalina (o epinefrina) y la noradrenalina (o norepinefrina). Estos tres neurotransmisores se sintetizan a partir del aminoácido tirosina (no confundir con la hormona tiroxina). Indolamina es la serotonina, un neurotransmisor que se sintetiza a partir de otro aminoácido, el triptófano.
c) La acetilcolina es una molécula que actúa como neurotransmisor en muchas sinapsis y en las uniones neuromusculares.
d) Neuropéptidos. Numerosos péptidos (son moléculas formadas por la unión de aminoácidos. Muchos aminoácidos unidos forman una proteína.) sintetizados en las neuronas actúan como neurotransmisores. Es el caso, por ejemplo, de las endorfinas.
e) Desde hace poco sabemos que ciertos gases como el óxido nítrico y el monóxido de carbono son capaces de atravesar fácilmente las membranas y estimular la formación de un segundo mensajero.

28 de septiembre de 2010

El nuevo impulso nervioso

Los potenciales postsinápticos no responden a lo indicado en el caso de los potenciales de acción. Esto es, no se rigen por la "ley del todo o nada", sino que las amplitudes (de excitación o de inhibición) dependerán de las intensidades que las provoquen, es decir, son potenciales graduados.
Por otra parte, esta respuesta, que se inicia allí donde termine un botón terminal (sea dendrita o cuerpo celular generalmente) va decayendo progresivamente según viaja en dirección al cono axónico, la estructura cónica que se encuentra en la unión del cuerpo celular y del axón. Así, si el neurotransmisor ha generado un PIP de –75mV, según viaja y se aleja del punto inicial, esta onda de hiperpolarización irá atenuándose a –74mV, –73mV... De la misma forma, si se produce un PEP de –65mV en un determinado lugar de la dendrita, la despolarización se irá haciendo menos intensa según nos alejamos de él: –64mV, –63mV, –62mV...
Pero, ¿por qué hemos hecho referencia al cono axónico? Imaginemos por un momento que estamos situados en este lugar de la anatomía de la neurona donde están llegando, a la vez y sucesivamente, numerosos (miles, incluso decenas de miles) PEPs y PIPs. Si la suma de los diferentes potenciales postsinápticos que llegan al cono axónico en un determinado momento llega a despolarizar la membrana hasta un nivel que se denomina umbral de excitación, se producirá un potencial de acción que se propagará tal y como hemos descrito anteriormente (en los artículos precedentes de este blog).
Con el fin de simplificar las cosas vamos a utilizar sólo tres potenciales postsinápticos. Supongamos que llegan a la vez dos PEPs, uno que despolariza la neurona hasta –68mV y otro hasta –66 mV y un PIP que hiperpolariza la neurona hasta –73 mV; el resultado será, desde un potencial de membrana de –70 mV, subir 2 mV, subir 4 mV y bajar 3 mV, que globalmente supondrá una despolarización de 3 mV (–67 mV). Dado que no se ha conseguido el umbral de excitación de esa neurona, los tres potenciales postsinápticos no generarán un potencial de acción. Este hecho por el cual se integran las señales que llegan a la vez en un determinado momento se denomina sumación espacial.
Supongamos que nos encontramos en el cono axónico del ejemplo precedente. El potencial de membrana está en –67 mV, después caerá hasta –68 mV y, en ese momento, llega un PEP que despolariza la neurona hasta –66 mV. Pues bien, se producirá una integración de las dos despolarizaciones, la residual y la nueva. El resultado será una despolarización de la neurona de 4 mV por encima del nivel que se encuentra cuando llega este PEP. En consecuencia, la neurona en el cono axónico pasará a –64 mV, con lo que habrá traspasado el umbral de excitación y, por tanto, se generará un potencial de acción y, consecuentemente, un impulso nervioso. Esta integración de las señales neuronales producidas en momentos diferentes se denomina sumación temporal.

19 de septiembre de 2010

Los potenciales han saltado

Ya se ha comentado que cuando se unen los neurotransmisores a los receptores de la neurona postsináptica se produce la entrada de iones. Pero, ¿cómo sucede?
En un receptor ionotrópico, el canal que está relacionado con él (recuerde que es una proteína) se abre o se cierra, con lo que se altera el paso de iones a través de la neurona. Así, puede suceder que se abra un canal de Cl-, o que se cierre uno de K+.
Si embargo, estos receptores no son los más frecuentes, los que predominan en las neuronas son los receptores metabotrópicos. Están unidos a una proteína especial que se denomina proteína G. De esta forma, cuando se une un neurotransmisor a uno de estos receptores se produce la separación de una parte de la proteína G, la cual es capaz de unirse a un canal iónico (que se abrirá o cerrará) o, según la neurona, producirá una serie de reacciones químicas que terminarán en la formación de una sustancia, denominada genéricamente segundo mensajero, que podrá influir en el metabolismo de la célula de formas muy diferentes.

En cualquier caso, la apertura o cierre de los canales determinará una entrada o salida de ciertos iones. De esta manera podrán ocurrir varias cosas:
a) Es posible que, por ejemplo, entre Na+. En este caso se producirá en la neurona postsináptica una despolarización "que no es un potencial de acción". El potencial de membrana puede pasar de –70 a –65 mV, por ejemplo. Este potencial que se ha creado se denomina potencial excitador postsináptico (PEP).
b) También es posible que el neurotransmisor abra, por ejemplo, un canal de Cl-. Como este ión está más concentrado en el exterior que en el interior de la neurona, entrará en la misma y hará que se pase de un valor de potencial de reposo de –70 a –75mV, por ejemplo. Este potencial se denomina potencial inhibidor postsináptico (PIP).