Mientras nuestro cerebro sea un arcano, el Universo, reflejo de su estructura, será también un misterio
(Santiago Ramón y Cajal)


15 de noviembre de 2010

Endorfinas, morfinas y sistema nervioso

Durante siglos el opio ha sido punto de referencia debido a su capacidad para reducir el dolor y producir euforia. Pero desde un aspecto terminológico conviene recordar que opiáceo se refiere a todos los productos derivados de la planta emparentada con la amapola y a la que los científicos denominan Papaver somniferum, o lo que es igual: “hierba del sueño”.
El vegetal produce un fruto en cápsula, globoso, que al hacerle unos pequeños cortes suelta un líquido que cuaja en contacto con el aire, el opio, y que contiene más de
veinte alcaloides. De éstos, el más importante es la morfina, sustancia descubierta en 1804 por el farmacéutico alemán Sertürner y así llamada en honor a Morfeo, dios del sueño de la mitología griega.
La morfina fue utilizada como analgésico desde el primer momento, aunque pronto se observó un enorme problema: creaba adicción. Por tal motivo, algunos laboratorios farmacéuticos se lanzaron a la búsqueda de un principio activo similar pero que no tuviera efectos indeseables. Así las cosas, la compañía Bayer inició en 1898 la comercialización de una sustancia, que había sintetizado en sus laboratorios, la heroína. Sin embargo, la nueva molécula, además de crear adicción, ejercía un efecto más rápido que la morfina.
En el año 1975, Hughes y Kosterlitz sorprendieron a la comunidad científica al descubrir la existencia de algunas sustancias que tenían las mismas propiedades de la morfina y… que eran sintetizadas por el propio organismo; por ello se las denominó genéricamente endorfinas, y más tarde opiáceos endógenos, para diferenciarlos de los que no eran fabricados por el cuerpo, o exógenos. Después, y en muy poco tiempo, se descubrieron otras sustancias similares: encefalina, b-endorfina, dinorfina, etc.
Curiosamente todos los opiáceos endógenos se localizan en zonas del sistema nervioso que guardan alguna relación con el procesamiento o la modulación del dolor.
¿Por qué los opiáceos actúan sobre el organismo?
Los opiáceos, endógenos o exógenos, podrán estimular a todas las neuronas que tengan receptores para ellos. Pero, ¿dónde se encuentran las células nerviosas sobre las que pueden actuar la morfina o la heroína?
Estas neuronas se localizan en diferentes zonas del cerebro: el área tegmental ventral, el núcleo accumbens, el área preóptica, la formación reticular, la sustancia gris periacueductal y otras. Pues bien, las regiones que acabo de citar explican de una manera muy clara los efectos, perfectamente detectables, de los opiáceos: refuerzo, descenso de temperatura (hipotermia), analgesia, etc. 

5 de noviembre de 2010

Señales externas y sistema neuroendocrino

El hipotálamo produce unas hormonas que pueden ser de dos tipos: las llamadas hormonas de liberación y hormonas de inhibición hipotalámicas. Estas sustancias se fabrican en el hipotálamo y viajan a través de vasos sanguíneos hasta la adenohipófisis, donde ejercen su efecto.
Veamos un ejemplo que explique esta “cascada” hormonal que nace en el hipotálamo. Esta estructura neuroendocrina produce una hormona que se denomina hormona liberadora de tirotropina (u hormona liberadora de TSH) que es llevada por los vasos sanguíneos hasta la adenohipófisis. Una vez allí actúa haciendo que se fabrique más TSH y que se libere esta hormona. La TSH, cuando llega a la glándula tiroidea, hace que se libere a la sangre las hormonas tiroxina y triyodotironina. Finalmente, estas hormonas tienen efectos sobre el metabolismo celular, crecimiento, etc.
Pero esta cascada puede ser alterada por factores perfectamente bien conocidos y estudiados: el frío afecta de tal manera al hipotálamo que provoca un aumento en la secreción de la hormona liberadora de tirotropina y por tanto, una mayor secreción de TSH primero y de hormonas tiroideas después. Determinados estados emocionales, como los de ansiedad, provocan un agudo descenso en la liberación de TSH y, en consecuencia, de las hormonas que produce la glándula tiroidea.


26 de octubre de 2010

Dopamina y psicosis

Aunque en neurobiología las pruebas científicas de un hecho neuronal casi nunca son concluyentes debido, principalmente, a las numerosas interconexiones entre las células nerviosas, es bastante incuestionable que la dopamina tiene una importancia fundamental en las psicosis. Lo que no es excluyente con otras teorías que postulan que, además, participan en la enfermedad otros neurotransmisores.
Así, en general, podemos afirmar que aquellos fármacos que aumentan la disponibilidad de la dopamina tienen efectos psicóticos positivos y los que disminuyen la dopamina tienen como efecto reducir los signos psicóticos positivos.
Ya desde la década de los 50 del siglo XX se sabía que la reserpina, disminuía los niveles de dopamina, y de otras monoaminas, y tenía un buen efecto antisicótico. También se conoce desde hace mucho tiempo que la cocaína y las anfetaminas aumentan las cantidades de dopamina en los espacios intercelulares de las neuronas y generan episodios semejantes a los que se presentan en personas enfermas por esquizofrenia.


La dopamina es un neurotransmisor que se acopla a los receptores correspondientes. Sin embargo, hay determinados fármacos que se unen a los receptores postsinápticos de la dopamina y, en consecuencia, no permiten la actuación del neurotransmisor. Cualquier fármaco que bloquea la neurotransmisión debida a la dopamina y evita o reduce los signos de la psicosis de denomina, genéricamente, neuroléptico.

17 de octubre de 2010

Las vías sensoriales tienen pocas neuronas

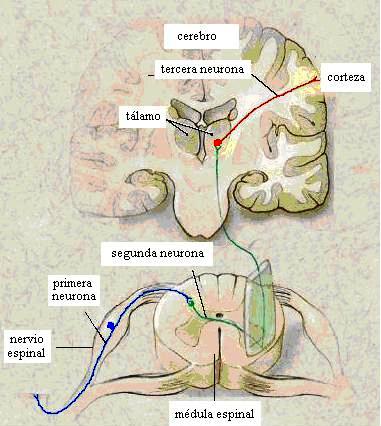
Los circuitos nerviosos que llegan a la corteza cerebral desde los receptores son vías más o menos largas, pero en ellos no suelen estar implicadas muchas neuronas. Veamos algún ejemplo.
Desde la retina ocular, donde se ubican las células receptoras visuales (conos y bastones), parten neuronas (sensitivas) que forman el nervio óptico (de cada ojo) y que finalizan en el tálamo. Aquí hacen sinapsis con otras neuronas que finalizan en la corteza visual. En resumen, un circuito visual, desde que sale del ojo, necesita dos neuronas: una que llega hasta el tálamo y otra que va desde esta región cerebral hasta la corteza cerebral.

Claro que usted pensará que esto se debe a que los receptores visuales y la corteza visual se encuentran espacialmente muy cerca. Sin embargo, aunque esto es verdad, no es por ello.
En efecto, si nos fijamos en un circuito doloroso que parte, por ejemplo, de un músculo de la pierna, los impulsos nerviosos viajan por una neurona (sensitiva) que termina en la médula espinal. Aquí conecta con otra neurona cuyo axón cruza al otro lado (decimos que decusa y, por ello, que es contralateral) y termina en el tálamo. Aquí conecta con otra neurona que finaliza en la corteza cerebral.  Es un caso, por tanto, muy semejante al anterior, con tres neuronas llega la información cerebral a ser consciente.

6 de octubre de 2010

Tipos de neurotransmisores

Hay varias clases de neurotransmisores y la mayoría de ellos generan un PEP o un PIP, aunque, en algunos casos, un determinado neurotransmisor puede producir excitación o inhibición dependiendo del receptor al que se una.
a) Algunos son aminoácidos (los componentes de las proteínas).
Son los casos del aminoácido glutamato (el neurotransmisor excitatorio más abundante en nuestra especie), el aspartato, la glicina y el ácido gamma-aminobutírico (GABA); este último es el neurotransmisor inhibidor más abundante.
b) Otros son monoaminas.
En este caso hay dos grupos de neurotransmisores: las catecolaminas y las indolaminas. De entre las primeras destacamos la dopamina, adrenalina (o epinefrina) y la noradrenalina (o norepinefrina). Estos tres neurotransmisores se sintetizan a partir del aminoácido tirosina (no confundir con la hormona tiroxina). Indolamina es la serotonina, un neurotransmisor que se sintetiza a partir de otro aminoácido, el triptófano.
c) La acetilcolina es una molécula que actúa como neurotransmisor en muchas sinapsis y en las uniones neuromusculares.
d) Neuropéptidos. Numerosos péptidos (son moléculas formadas por la unión de aminoácidos. Muchos aminoácidos unidos forman una proteína.) sintetizados en las neuronas actúan como neurotransmisores. Es el caso, por ejemplo, de las endorfinas.
e) Desde hace poco sabemos que ciertos gases como el óxido nítrico y el monóxido de carbono son capaces de atravesar fácilmente las membranas y estimular la formación de un segundo mensajero.

28 de septiembre de 2010

El nuevo impulso nervioso

Los potenciales postsinápticos no responden a lo indicado en el caso de los potenciales de acción. Esto es, no se rigen por la "ley del todo o nada", sino que las amplitudes (de excitación o de inhibición) dependerán de las intensidades que las provoquen, es decir, son potenciales graduados.
Por otra parte, esta respuesta, que se inicia allí donde termine un botón terminal (sea dendrita o cuerpo celular generalmente) va decayendo progresivamente según viaja en dirección al cono axónico, la estructura cónica que se encuentra en la unión del cuerpo celular y del axón. Así, si el neurotransmisor ha generado un PIP de –75mV, según viaja y se aleja del punto inicial, esta onda de hiperpolarización irá atenuándose a –74mV, –73mV... De la misma forma, si se produce un PEP de –65mV en un determinado lugar de la dendrita, la despolarización se irá haciendo menos intensa según nos alejamos de él: –64mV, –63mV, –62mV...
Pero, ¿por qué hemos hecho referencia al cono axónico? Imaginemos por un momento que estamos situados en este lugar de la anatomía de la neurona donde están llegando, a la vez y sucesivamente, numerosos (miles, incluso decenas de miles) PEPs y PIPs. Si la suma de los diferentes potenciales postsinápticos que llegan al cono axónico en un determinado momento llega a despolarizar la membrana hasta un nivel que se denomina umbral de excitación, se producirá un potencial de acción que se propagará tal y como hemos descrito anteriormente (en los artículos precedentes de este blog).
Con el fin de simplificar las cosas vamos a utilizar sólo tres potenciales postsinápticos. Supongamos que llegan a la vez dos PEPs, uno que despolariza la neurona hasta –68mV y otro hasta –66 mV y un PIP que hiperpolariza la neurona hasta –73 mV; el resultado será, desde un potencial de membrana de –70 mV, subir 2 mV, subir 4 mV y bajar 3 mV, que globalmente supondrá una despolarización de 3 mV (–67 mV). Dado que no se ha conseguido el umbral de excitación de esa neurona, los tres potenciales postsinápticos no generarán un potencial de acción. Este hecho por el cual se integran las señales que llegan a la vez en un determinado momento se denomina sumación espacial.
Supongamos que nos encontramos en el cono axónico del ejemplo precedente. El potencial de membrana está en –67 mV, después caerá hasta –68 mV y, en ese momento, llega un PEP que despolariza la neurona hasta –66 mV. Pues bien, se producirá una integración de las dos despolarizaciones, la residual y la nueva. El resultado será una despolarización de la neurona de 4 mV por encima del nivel que se encuentra cuando llega este PEP. En consecuencia, la neurona en el cono axónico pasará a –64 mV, con lo que habrá traspasado el umbral de excitación y, por tanto, se generará un potencial de acción y, consecuentemente, un impulso nervioso. Esta integración de las señales neuronales producidas en momentos diferentes se denomina sumación temporal.

19 de septiembre de 2010

Los potenciales han saltado

Ya se ha comentado que cuando se unen los neurotransmisores a los receptores de la neurona postsináptica se produce la entrada de iones. Pero, ¿cómo sucede?
En un receptor ionotrópico, el canal que está relacionado con él (recuerde que es una proteína) se abre o se cierra, con lo que se altera el paso de iones a través de la neurona. Así, puede suceder que se abra un canal de Cl-, o que se cierre uno de K+.
Si embargo, estos receptores no son los más frecuentes, los que predominan en las neuronas son los receptores metabotrópicos. Están unidos a una proteína especial que se denomina proteína G. De esta forma, cuando se une un neurotransmisor a uno de estos receptores se produce la separación de una parte de la proteína G, la cual es capaz de unirse a un canal iónico (que se abrirá o cerrará) o, según la neurona, producirá una serie de reacciones químicas que terminarán en la formación de una sustancia, denominada genéricamente segundo mensajero, que podrá influir en el metabolismo de la célula de formas muy diferentes.

En cualquier caso, la apertura o cierre de los canales determinará una entrada o salida de ciertos iones. De esta manera podrán ocurrir varias cosas:
a) Es posible que, por ejemplo, entre Na+. En este caso se producirá en la neurona postsináptica una despolarización "que no es un potencial de acción". El potencial de membrana puede pasar de –70 a –65 mV, por ejemplo. Este potencial que se ha creado se denomina potencial excitador postsináptico (PEP).
b) También es posible que el neurotransmisor abra, por ejemplo, un canal de Cl-. Como este ión está más concentrado en el exterior que en el interior de la neurona, entrará en la misma y hará que se pase de un valor de potencial de reposo de –70 a –75mV, por ejemplo. Este potencial se denomina potencial inhibidor postsináptico (PIP). 

9 de septiembre de 2010

El nuevo impulso nervioso

Los potenciales postsinápticos no responden a lo indicado en el caso de los potenciales de acción. Esto es, no se rigen por la "ley del todo o nada", sino que las amplitudes (de excitación o de inhibición) dependerán de las intensidades que las provoquen, es decir, son potenciales graduados.
Por otra parte, esta respuesta, que se inicia allí donde termine un botón terminal (sea dendrita o cuerpo celular generalmente) va decayendo progresivamente según viaja en dirección al cono axónico, la estructura cónica que se encuentra en la unión del cuerpo celular y del axón. Así, si el neurotransmisor ha generado un PIP de –75mV, según viaja y se aleja del punto inicial, esta onda de hiperpolarización irá atenuándose a –74mV, –73mV... De la misma forma, si se produce un PEP de –65mV en un determinado lugar de la dendrita, la despolarización se irá haciendo menos intensa según nos alejamos de él: –64mV, –63mV, –62mV...
Pero, ¿por qué hemos hecho referencia al cono axónico? Imaginemos por un momento que estamos situados en este lugar de la anatomía de la neurona donde están llegando, a la vez y sucesivamente, numerosos (miles, incluso decenas de miles) PEPs y PIPs. Si la suma de los diferentes potenciales postsinápticos que llegan al cono axónico en un determinado momento llega a despolarizar la membrana hasta un nivel que se denomina umbral de excitación, se producirá un potencial de acción que se propagará tal y como hemos descrito anteriormente (en los artículos precedentes de este blog).
Con el fin de simplificar las cosas vamos a utilizar sólo tres potenciales postsinápticos. Supongamos que llegan a la vez dos PEPs, uno que despolariza la neurona hasta –68mV y otro hasta –66 mV y un PIP que hiperpolariza la neurona hasta –73 mV; el resultado será, desde un potencial de membrana de –70 mV, subir 2 mV, subir 4 mV y bajar 3 mV, que globalmente supondrá una despolarización de 3 mV (–67 mV). Dado que no se ha conseguido el umbral de excitación de esa neurona, los tres potenciales postsinápticos no generarán un potencial de acción. Este hecho por el cual se integran las señales que llegan a la vez en un determinado momento se denomina sumación espacial.
Supongamos que nos encontramos en el cono axónico del ejemplo precedente. El potencial de membrana está en –67 mV, después caerá hasta –68 mV y, en ese momento, llega un PEP que despolariza la neurona hasta –66 mV. Pues bien, se producirá una integración de las dos despolarizaciones, la residual y la nueva. El resultado será una despolarización de la neurona de 4 mV por encima del nivel que se encuentra cuando llega este PEP. En consecuencia, la neurona en el cono axónico pasará a –64 mV, con lo que habrá traspasado el umbral de excitación y, por tanto, se generará un potencial de acción y, consecuentemente, un impulso nervioso. Esta integración de las señales neuronales producidas en momentos diferentes se denomina sumación temporal.

30 de agosto de 2010

El “salto” del impulso nervioso

Las señales viajan de una neurona a otra a través de una zona especial llamada sinapsis. Así, cuando el potencial de acción llega al final del axón, a lo que se denominan botones terminales, provoca la liberación de unas sustancias químicas, llamadas genéricamente neurotransmisores, que transportan las señales entre las neuronas.
En estas sinapsis los neurotransmisores se encuentran en el interior de unas vesículas que se localizan en los botones presinápticos (o terminales). La membrana de estos botones se llama membrana presináptica y esta célula nerviosa es la neurona presináptica. Por su parte, la neurona adonde va a pasar la información se denomina neurona postsináptica y sus membranas se llaman membranas postsinápticas. El espacio que separa físicamente las dos neuronas se denomina espacio o hendidura sináptica.
Estas sinapsis se denominan sinapsis químicas, para diferenciarlas de las sinapsis eléctricas en las que la unión entre las neuronas es tan estrecha que no necesitan neurotransmisor. Estas últimas son menos frecuentes que las químicas. Veamos cómo funcionan las sinapsis químicas.
Cuando el potencial de acción llega al final de la neurona, a un botón terminal, se abren unos canales de los que todavía no tenemos noticia: los canales de Ca++. Como este ión está más concentrado, en esta zona de la neurona, fuera que dentro, pasa al interior a través de los canales (1). Por su parte, la entrada de Ca++ hace que las vesículas sinápticas se muevan hacia la membrana presináptica, con la que se fusionan (2). Después de esta unión íntima el contenido de las vesículas sale a la hendidura sináptica (3). Los neurotransmisores alcanzan los receptores postsinápticos, localizados en la neurona de la membrana postsináptica, y se unen a ellos (4). Como resultado de esta unión se produce la entrada de iones cuyo resultado veremos más tarde. La transmisión finaliza cuando el neurotransmisor es degradado por unas enzimas especializadas localizadas en la hendidura sináptica; también es posible que el neurotransmisor sea recaptado (el fenómeno se denomina recaptación) por una proteína transportadora (5), ubicada en la membrana presináptica, que lo lleve al interior de la neurona que lo ha liberado y donde más tarde se incorporará de nuevo a las vesículas.
Es importante tener en cuenta que los receptores postsinápticos son específicos, es decir, un determinado neurotransmisor encajará sólo con su receptor. Así, el neurotransmisor acetilcolina podrá acoplarse a sus receptores y el neurotransmisor dopamina lo hará con los suyos, pero no podrá unirse a los receptores de la acetilcolina.

18 de agosto de 2010

El impulso nervioso

Los potenciales de acción se desplazan a lo largo del axón sin disminuir su intensidad, es decir, no se atenúan en su desplazamiento.
La transmisión del potencial de acción no es la de una corriente eléctrica: es mucho más lenta que ella y la intensidad del impulso se mantiene constante. Esto quiere decir que, en cualquier punto del axón, o hay un determinado potencial de acción, como el descrito en el anterior artículo de este blog, o no lo hay, es decir, no ocurren potenciales de acción de diferentes intensidades. Por ello decimos que siguen el principio del todo o nada.
Una vez que se ha producido un potencial de acción en un punto del axón, como consecuencia de la entrada y salida sucesivas de los iones sodio y potasio respectivamente, las corrientes de Na+ se mueven por el interior del axón provocando una apertura de los canales de sodio adyacentes y un nuevo potencial de acción. 

En la figura adjunta, en A se está produciendo la despolarización a la izquierda del axón como consecuencia de la entrada de Na+, la cual se observa completa en B. Estos iones se mueven hacia zonas adyacentes y producen la apertura de los canales de Na+ de esa zona y la consiguiente despolarización. Mientras tanto, en la zona despolarizada anteriormente se regenera la situación inicial merced a la salida de K+ (lo que está representado en C).
En relación con la conducción del impulso nervioso, los axones de las neuronas pueden estar recubiertos de unas células de glía que pueden contener una sustancia lipídica denominada mielina. Los espacios sin mielina del axón se llaman nódulos de Ranvier. Pues bien, la mielina hace que los potenciales de acción sólo se generen en los nódulos, o lo que es igual, que el impulso nervioso discurra a "saltos" desde un nódulo de Ranvier a otro. Por esta razón, la propagación del impulso nervioso descrita se denomina propagación saltatoria. Si en el axón de la neurona no hay mielina la propagación del impulso nervioso se realiza de manera continua.
El hecho de tener o no mielina tiene una gran importancia en cuanto a la velocidad de transmisión del impulso nervioso. En efecto, los axones con mielina transmiten el impulso nervioso a velocidades de hasta 100 m/s, mientras que las neuronas sin mielinizar conducen los potenciales de acción a velocidades 100 veces menores y es que si hay mielina hay menos puntos que despolarizar.
Por otra parte, las neuronas con axones de gran diámetro conducen los impulsos nerviosos a más velocidad que las de axones de pequeño calibre